
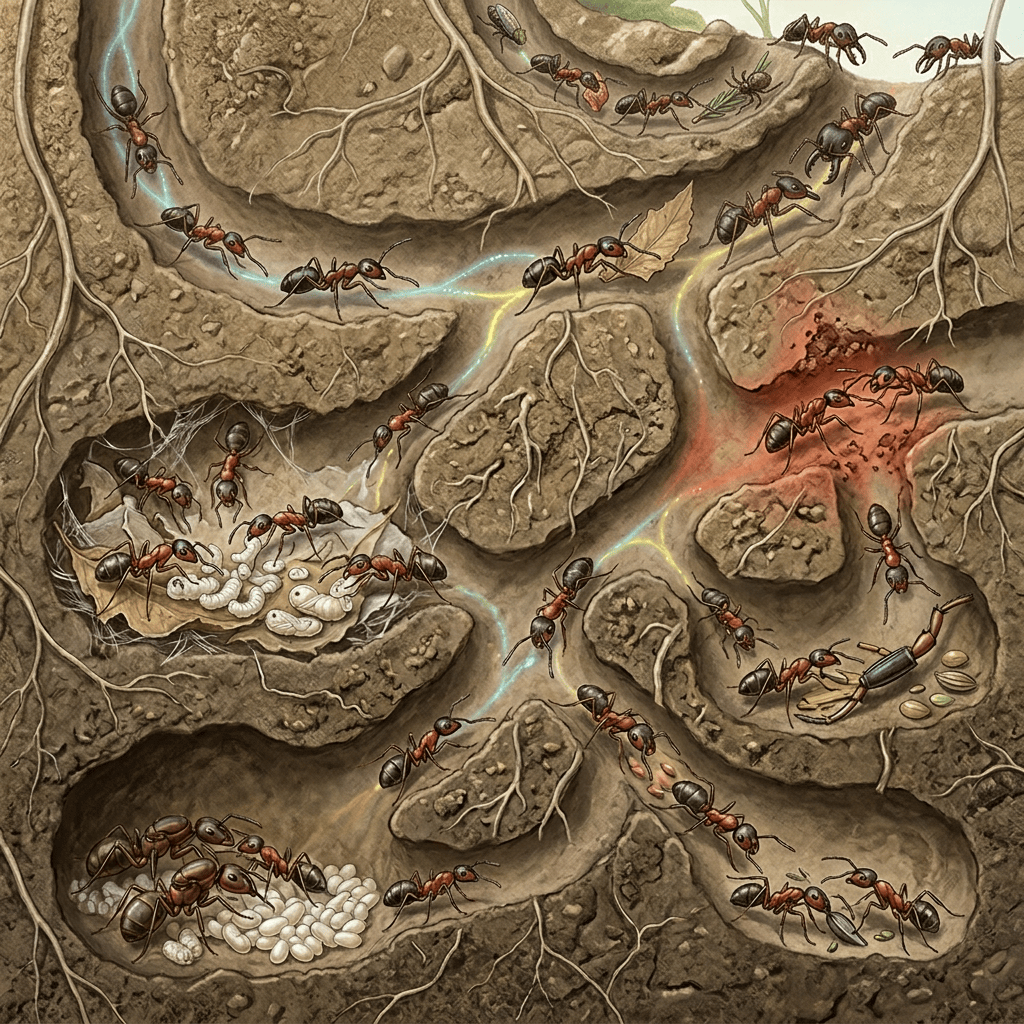
Los comportamientos complejos de las hormigas en sus colonias, al principio cuidando a las larvas, en su juventud y madurez limpiando la colonia, y al envejecer saliendo del hormiguero a traer comida, no parecen aprendidos sino heredados e innatos. Pero lo único que se puede heredar según la ciencia biológica son los genes. Pero los genes lo único que “saben” es codificar proteínas, no son «archivos de instrucciones» para limpiar o salir a buscar comida. Hay una brecha o gap muy grande entre lo que se puede heredar y aquellos comportamientos complejos aparentemente «instintivos». En este artículo esbozaremos cómo rellena la ciencia en parte ese gap y qué hipótesis considera más creíbles para acabar de rellenarlo. Se trata de una de las fronteras más fascinantes y complejas de la biología moderna.
Clases de comportamientos instintivos y su evolución
Los científicos suelen dividir los comportamientos instintivos o heredados en tres grandes categorías según su complejidad:
Reflejos simples: Son las respuestas más básicas e inmediatas a un estímulo específico. Un ejemplo claro es retirar la mano automáticamente al tocar una superficie hirviendo o el parpadeo cuando un objeto se acerca rápido al ojo.
Patrones de acción fija (PAFs): Son secuencias de acciones complejas y coordinadas que se desencadenan ante un estímulo señal. Una vez que empiezan, el animal las ejecuta de forma idéntica hasta el final. Por ejemplo, cuando una gansa ve un huevo fuera de su nido, utiliza su pico para rodarlo de vuelta en un movimiento muy específico; incluso si se le quita el huevo a mitad de camino, ella completará todo el movimiento. Otro ejemplo notable es la construcción de una telaraña.
Instintos de supervivencia complejos (ISC): Conductas esenciales para la preservación de la vida y la especie, fuertemente ligadas a los cambios hormonales y ambientales. Aquí entran la migración de las aves en otoño, la hibernación de los osos, los rituales de apareamiento de los peces o los rituales de comportamiento de los insectos sociales.
La biología evolutiva ha tratado de salvar el enorme gap (brecha) que hay entre construir una cadena de aminoácidos y generar un PAF o un Instinto de Supervivencia Complejo. En el caso de los patrones de acción fija (PAF), que son más simples que los ISC, la biología evolutiva explica que los genes no codifican el comportamiento final directamente, sino que construyen los «circuitos» del sistema nervioso que lo ejecutan. El gran dilema histórico era entender cómo algo tan complejo y coordinado como el cortejo de un ave o la construcción de una telaraña podía transmitirse en el ADN. La respuesta moderna de la síntesis evolutiva y la neuroetología se basa en tres pilares fundamentales:
1. La codificación de redes neuronales (El «Hardware» biológico)
Los genes contienen las instrucciones para fabricar proteínas. Estas proteínas guían el desarrollo embrionario, determinando exactamente cómo se conectan las neuronas entre sí y en qué áreas del cerebro se ubican.
Los genes no heredan el «saber tejer una telaraña», sino que construyen un cerebro con distintos circuitos neuronales específicos. Si alguno de estos circuitos especializados se activa, procesa la información espacial y motora de una sola manera posible.
2. El Mecanismo Desencadenador Innato (MDI)
Para que un patrón de acción fija se active, la evolución ha desarrollado un mecanismo que conecta directamente la percepción con la acción. Se divide en tres pasos controlados genéticamente:
(i) Estímulo señal (Input): Un estímulo externo específico del entorno (un color, un sonido, una forma).
(ii) Mecanismo Desencadenador Innato (Filtro): Una red de neuronas sensoriales programadas genéticamente para reconocer solo ese estímulo y descartar todo lo demás.
(iii) Generador de Patrones Centrales (Output): Un circuito en el sistema nervioso central que, al recibir la señal del MDI, actúa como un interruptor y ejecuta una secuencia de movimientos musculares coordinados concreta (el PAF) de forma automática.
3. Pleiotropía y selección natural
Rara vez un solo gen controla un comportamiento. Los PAF son el resultado de la pleiotropía (un gen influye en múltiples rasgos) y de complejos sistemas poligénicos. La selección natural actúa con extrema dureza sobre estos circuitos: si una mutación altera mínimamente la conexión neuronal y el animal ejecuta mal su ritual de apareamiento o el escape ante un depredador, ese individuo no se reproduce. Esto fija los patrones de acción de manera idéntica en toda la especie.
El enfoque de la Evo-Devo (Biología Evolutiva del Desarrollo)
La pieza final que unió ambos mundos es la Evo-Devo. Esta disciplina demostró que hay genes reguladores que activan o desactivan a otros muchos genes durante la construcción de las células y tejidos del cerebro. Lo hacen fabricando unas proteínas, llamadas factores de transcripción, que se unen a otros genes para inhibir o activar su funcionamiento. Pequeñas mutaciones en los genes reguladores pueden reorganizar por completo las conexiones de los circuitos neuronales. Los genes homeobox (que estudiamos en Resumen del libro “Deconstruyendo a Darwin- Los enigmas de la evolución a la luz de la nueva genética”, de Javier Sampedro) son una clase fundamental de genes reguladores. Así, un cambio genético relativamente simple puede dar como resultado la aparición o modificación de un comportamiento instintivo extremadamente complejo.
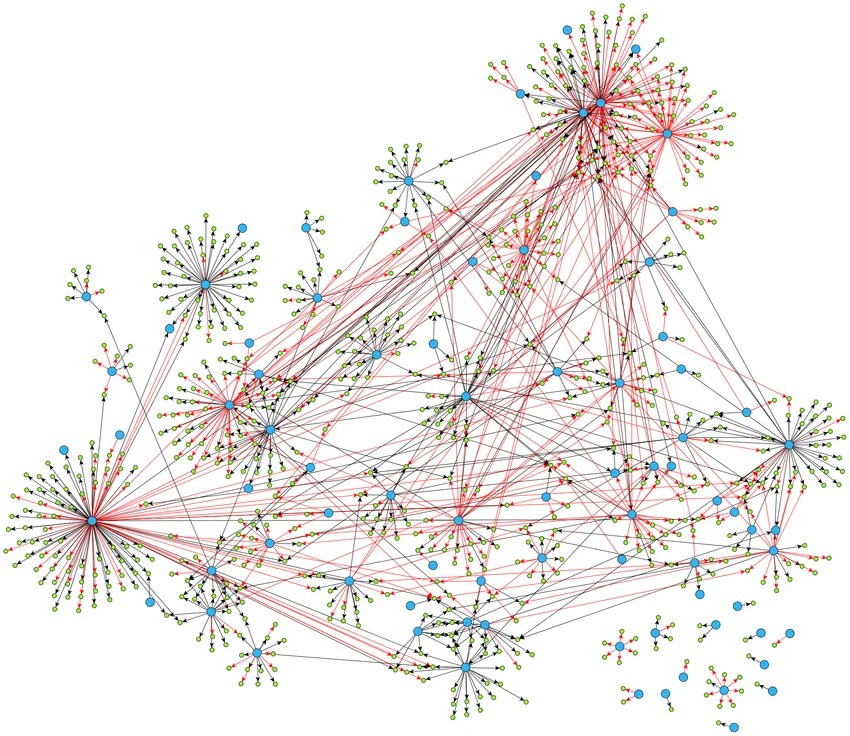
Fig. Los factores de transcripción (círculos azules) son proteínas producidas por genes reguladores. Estas proteínas viajan por la célula activando (flechas negras) o inhibiendo (flechas rojas) a uno o varios genes (círculos verdes). Cuando el factor producido por un gen actúa sobre muchos genes, este gen regulador suele controlar máquinas celulares especializadas en tareas complejas específicas
La existencia de estos genes reguladores de sistemas genéticos de comportamiento senso-motor complejo, permite explicar como la evolución puede jugar con comportamientos simples, de tipo reflejo, para construir comportamientos complejos que estén adaptados al medio ambiente. Este es el modelo del gradualismo que usa la Evo-Devo.
Al igual que el ojo humano no apareció de golpe, sino que empezó como un grupo de células sensibles a la luz, los comportamientos instintivos complejos (ya sean PAF o ISC) evolucionaron a partir de pequeños pasos desde comportamientos previos algo más simples, en distintas etapas donde cada etapa ofrecía una ventaja para sobrevivir.
Ejemplo: la evolución del FAP (Patrón de Acción Fija) de tejer telarañas
Las arañas no empezaron tejiendo las complejas redes geométricas (orbes) que vemos hoy en los jardines. La evolución de este circuito neuronal ocurrió en etapas bien documentadas por el registro fósil y la filogenia.
Paso 1: Proteger los huevos (El origen de la seda). Inicialmente, las arañas primitivas usaban la seda solo para fabricar sacos que protegieran sus huevos. Los genes regulaban únicamente la producción de proteínas de seda en glándulas simples.
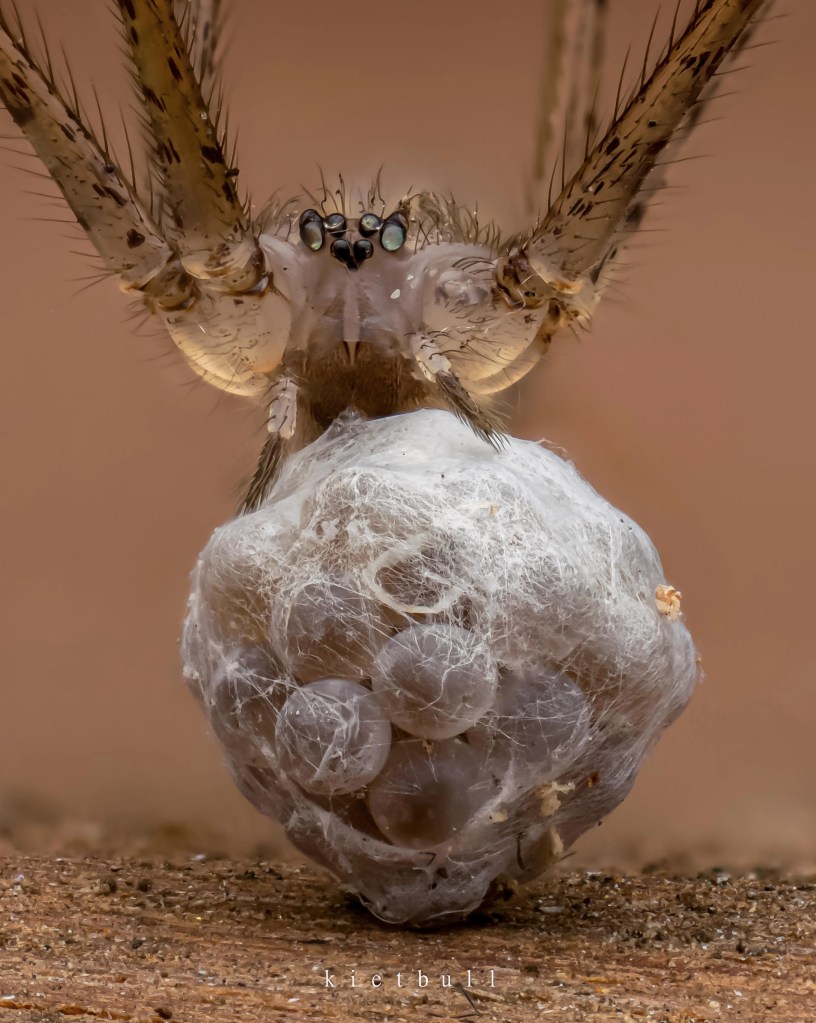
Foto. Araña de bodega con su saco de huevos
Paso 2: Forrar la madriguera. Con el tiempo, las arañas que vivían en túneles subterráneos empezaron a forrar las paredes con seda para evitar desprendimientos de tierra y mantener la humedad.
Paso 3: Las «líneas de alarma» (El nacimiento del circuito sensorial). Al salir de la madriguera, las arañas dejaban hilos sueltos. Si una presa tropezaba con un hilo, este vibraba. El sistema nervioso de la araña evolucionó para conectar una sensación mecánica (vibración) con una respuesta motora (atacar). Las arañas que reaccionaban a la vibración comían más y dejaban más descendencia.
Paso 4: Redes en embudo y redes aéreas. El circuito neuronal se complejizó: en lugar de hilos sueltos, empezaron a tejer mantas de seda alrededor de la entrada (redes en embudo). Cuando las arañas colonizaron los espacios aéreos (plantas y árboles), la selección natural favoreció a los genes que coordinaban movimientos en patrones geométricos (radios y espirales) para interceptar insectos voladores.
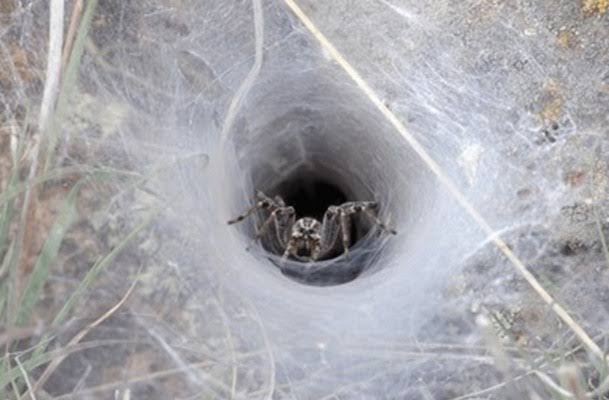
Foto. Tela de seda en embudo en la entrada del nido de una araña
Los mecanismos biológicos de los ISC (Instintos de Supervivencia Complejos)
En un ISC actúan los mismos mecanismos que vimos en los PAF, como la arquitectura del desarrollo del sistema nervioso, el mecanismo disparador innato o los genes reguladores de la Evo-Devo, pero a éstos se añaden mecanismos nuevos como la autoorganización por reglas simples y la epigenética conductual. Estos mecanismos adicionales son especialmente visibles en los comportamientos organizados de los insectos sociales. Tomando como ejemplo las colonias de hormigas:
1. El cerebro no hereda «órdenes», hereda un mapa de cableado y sensibilidad
Como comentamos antes, los genes construyen proteínas, y esas proteínas guían cómo se forman las células, incluyendo las neuronas y sus conexiones (sinapsis). En lugar de codificar el comportamiento de «cuidar una larva», los genes codifican receptores químicos específicos en el cerebro de la hormiga.
Las hormigas operan casi como robots químicos. Una hormiga joven nace con una altísima densidad de receptores para ciertas feromonas o estímulos que emiten las larvas. El «instinto» de cuidarlas es, en realidad, una respuesta refleja e inevitable de su sistema nervioso ante la presencia de ese estímulo químico. No hay razonamiento; hay una llave molecular (la feromona de la larva) encajando en una cerradura biológica (el receptor en el cerebro de la hormiga).
2. El «reloj de arena» biológico (Polietismo etario)
El cambio de tarea según las hormigas envejecen: de cuidadoras a limpiadoras y finalmente a recolectoras, se llama polietismo etario. La hipótesis más sólida para explicar este cambio no es que tengan un manual que pasen de página al cumplir días, sino un reloj neurohormonal genéticamente programado.
Conforme la hormiga envejece, la expresión de ciertos genes en su cerebro cambia de forma natural (un proceso regulado por hormonas como la hormona juvenil).
Al cambiar estas hormonas, cambian las proteínas que se expresan en sus neuronas, lo que provoca que sus niveles de sensibilidad química cambien.
De repente, la feromona de la larva ya no le genera ninguna respuesta (su cerebro se vuelve «ciego» a ella), pero se vuelve extremadamente sensible a la luz exterior o a los estímulos del entorno, lo que la empuja a salir del hormiguero a buscar comida. El cambio de comportamiento es un subproducto del cambio químico de su cerebro.
3. La hipótesis de la Autoorganización (Comportamiento Emergente)
Esta es quizá la forma más elegante en que la ciencia explica la complejidad. Las hormigas no tienen un plano mental de cómo debe funcionar el hormiguero. Su comportamiento complejo es emergente, similar a cómo los copos de nieve crean formas geométricas perfectas basadas solo en leyes físicas simples (para una introducción al tema véanse estos dos artículos previos: La evolución de la complejidad y Modelos Complejos en Ciencias Naturales y Sociales).
Una hormiga sigue reglas locales ultra-sencillas: «Si huelo a basura y no hay nadie limpiando, recógela», o «Si el nivel de CO2 es alto, excava» (esta regla permite ventilar mejor lugares con mucho CO2 y desenterrar compañeras). Cuando se dejan actuar tres o cuatro reglas simples como estas en 50 000 hormigas interactuando entre sí, el resultado es la formación de filas de limpiadoras o de exploradoras que salen, capas de cuidadoras, aparición de nuevos túneles de aireación, etc. Parece una coreografía inteligentemente planificada, pero en realidad es pura estadística y efecto autoorganizativo de reflejos individuales.
4. Epigenética y plasticidad de umbral
Hoy sabemos que el salto entre el gen y la proteína no es rígido. Existe la epigenética, modificaciones que activan o desactivan genes sin alterar el ADN.
Las hormigas tienen «umbrales de respuesta». Si un hormiguero se queda de repente sin recolectoras (por ejemplo, porque un depredador las atacó fuera), el nivel de comida baja drásticamente. Ese estrés ambiental y la falta de contacto con las recolectoras mayores provoca una reacción química en el cuerpo de las hormigas jóvenes. Su ADN activa de forma acelerada los genes de recolectora, «saltándose» la etapa de limpiadoras.
En resumen, las hormigas no «saben» lo que hacen; están equipadas con un sofisticado sistema de algoritmos químicos moleculares donde la edad, las hormonas y los estímulos de sus hermanas determinan qué botón de su cerebro se activa en cada momento.
La evolución de los comportamientos epigenéticos complejos a partir de situaciones más simples
Existen numerosos estudios científicos que abordan el problema de la evolución de los comportamientos complejos. En las últimas décadas, la biología evolutiva del desarrollo (conocida como Evo-Devo) y la genética del comportamiento han desarrollado modelos robustos para explicar cómo la selección natural pudo moldear y «fijar» comportamientos epigenéticos tan complejos a partir de estados ancestrales solitarios y simples. [1]
Para la ciencia, la respuesta no es que aparecieran «genes mágicos de hormiga limpiadora». La evolución utilizó un mecanismo fascinante: tomó herramientas genéticas que insectos solitarios ya usaban para sobrevivir y las «desacopló» mediante interruptores epigenéticos para repartirlas entre la colonia. [1, 2]
Los estudios científicos explican esta transición a través de tres grandes hipótesis y modelos empíricos:
1. La hipótesis del «Plan Terrenal de Trabajo» (Ovarian Ground Plan Hypothesis)
Formulada originalmente por la bióloga Mary Jane West-Eberhard, es la teoría más respaldada para explicar la transición de la soledad a la sociedad de insectos. [1]
El antepasado solitario: Piensa en una avispa solitaria ancestral. A lo largo de su vida, pasaba por ciclos biológicos: cuando sus ovarios maduraban y tenían huevos, se quedaba en el nido a cuidarlos; cuando sus ovarios se vaciaban, su química cerebral cambiaba y salía a buscar comida. Su comportamiento estaba ligado a su ciclo reproductivo interno. [1, 3]
El «hackeo» evolutivo: Los estudios genéticos demuestran que las hormigas y abejas sociales rompieron ese ciclo. Mediante marcas epigenéticas (como la metilación del ADN), el genoma de la colonia aprendió a bloquear permanentemente los ovarios de las obreras. Al estar sus ovarios bloqueados, su cerebro quedó atrapado en la «fase química» permanente de cuidar a las larvas de otros, cooptando un circuito que ya existía en sus ancestros solitarios. [1, 4, 5]
2. La Asimilación Genética y el «Efecto Baldwin»
¿Cómo pasa un comportamiento provocado por el ambiente a estar inscrito de forma innata? Los biólogos evolutivos recurren al concepto de Asimilación Genética (estudiado inicialmente por Conrad Waddington) y al Efecto Baldwin. [6]
Paso 1 (Plasticidad Fenotípica): Un cambio ambiental o social obliga a un organismo a cambiar su comportamiento gracias a su flexibilidad cerebral (epigenética activa). [7]
Paso 2 (Ventaja selectiva): Aquellos individuos cuyo genoma reacciona de forma más eficiente y rápida a ese estímulo ambiental sobreviven más. [8]
Paso 3 (Fijación): Con las generaciones, mutaciones genéticas aleatorias van acumulándose y «estabilizando» esa ruta química. Lo que antes requería un gran esfuerzo o un fuerte estímulo del entorno para activarse, ahora se enciende con un interruptor molecular mínimo. El comportamiento flexible se vuelve un instinto «cableado». [7, 8, 9]
3. El «Kit de herramientas moleculares» compartido (Molecular Toolkit)
Estudios recientes de genómica comparada, como los publicados en la revista Nature sobre la evolución convergente de la eusocialidad, revelaron algo sorprendente al secuenciar insectos sociales que evolucionaron por separado (como las hormigas y las abejas). [10]
Se descubrió que la naturaleza no inventó genes nuevos para las conductas complejas. En su lugar, utilizó un conjunto de herramientas moleculares altamente conservadas (como las vías de la insulina y la hormona juvenil) que ya manejaban la nutrición y el crecimiento en insectos solitarios.
La evolución simplemente cambió los reguladores (la epigenética) de estas vías, permitiendo que la cantidad de alimento que recibe una larva altere permanentemente qué partes de su ADN se expresan, decidiendo si se convertirá en una reina longeva o en una obrera de vida corta. [1, 4, 10, 11]
Un ejemplo real: La hormiga saltarina de la India (Harpegnathos saltator)
Para demostrar esto en laboratorios vivientes, los científicos estudian especies que están en «fases de transición evolutiva». En esta especie de hormiga, si la reina muere, las obreras entran en una brutal competencia física. Las ganadoras sufren un cambio epigenético radical en cuestión de días: sus ovarios se activan, su cerebro se encoge un 25% y sus comportamientos cambian por completo, pasando de limpiar y cazar a comportarse como reinas. [12]
Este fenómeno demuestra a los científicos que los dos «programas informáticos» de comportamiento (obrera y reina) coexisten enteros en el mismo ADN, y que la evolución simplemente añade o quita «candados químicos» según las necesidades de la historia evolutiva. [4]
[1] https://www.annualreviews.org
[2] https://pmc.ncbi.nlm.nih.gov
[3] https://www.frontiersin.org
[4] https://www.mdpi.com
[5] https://www.biorxiv.org
[6] https://en.wikipedia.org
[7] https://www.bohrium.com
[8] https://www.youtube.com
[9] https://pmc.ncbi.nlm.nih.gov
[10] https://www.nature.com
[11] https://pmc.ncbi.nlm.nih.gov
[12] https://cordis.europa.eu
La evolución del comportamiento en arañas y hormigas
El efecto Baldwin debió de jugar un papel tanto en las primeras fases de la evolución de la fabricación de telas de araña como en la especialización de tareas que se observa en un hormiguero.
Vimos que inicialmente las arañas fabricaban seda para fabricar sacos donde proteger sus huevos y, posteriormente, para tapizar las paredes de sus nidos subterráneos, haciéndolos más estables ante derrumbamientos. Al salir algunas arañas al exterior y colonizar arbustos y árboles debieron prosperar aquellas tan flexibles neuronalmente como para adaptar la tensión de los hilos de seda a la intensidad del viento o la presencia de lluvia. La biología evolutiva explica que la flexibilidad y el aprendizaje en animales simples no requieren «intencionalidad» ni consciencia de un objetivo final, sino que funcionan mediante bucles de retroalimentación (feedback) homeostáticos y sensoriales.
La araña primitiva no buscaba un hilo tenso porque «sabía» que era mejor; buscaba la tensión porque su sistema nervioso estaba programado para regular o detener el movimiento solo cuando recibía un estímulo físico concreto.
Imaginemos la araña como un robot con un programa muy simple. El comportamiento de segregar seda e intentar fijarla es un patrón motor que se repite en bucle (un generador de patrones centrales).
La araña instintivamente pega el hilo de seda segregado en un punto y se desplaza caminando o por gravedad hasta un punto alejado donde pegará el extremo del hilo. Tiene unas válvulas (las hileras) que dejan salir mayor o menor cantidad de seda mientras se mueve, pero la seda sale gracias al movimiento de la araña. Sus patas son sensibles a la tensión con que va quedando el hilo, que depende de la relación entre velocidad de desplazamiento y el grado de apertura de las hileras.
El genoma de la araña no tiene ningún plano del resultado final, sino una regla física: «Desplázate hasta un punto alejado segregando seda de forma que los receptores de las patas (órganos hendidos) detecten una resistencia de X Newtons». Cuando se alcanza el punto alejado el circuito sensorial envía una señal que hace que las patas peguen el hilo y la orden inhibitoria («cierra las hileras»).
La flexibilidad neural es «Refuerzo Químico», no planificación. Incluso en insectos y arácnidos, el cerebro libera neurotransmisores como la octopamina (el equivalente a la dopamina en vertebrados) cuando un circuito sensorial se estabiliza. Si la araña primitiva fijaba un hilo y este se movía impredeciblemente o se rompía, las vibraciones caóticas resultantes estresaban sus receptores, lo que desencadenaba respuestas de huida o abandono.
Si el hilo quedaba tenso y estable, el cese de las vibraciones caóticas y la estabilidad mecánica activaban vías de recompensa química en su ganglio cerebral. Esto reforzaba temporalmente esa micro ruta de conexiones neuronales específica.
En las arañas primitivas, el ajuste entre la velocidad a la que caminaban y la fuerza con que cerraban sus hileras requería cierta flexibilidad y corrección sobre la marcha (ajustes individuales basados en la rugosidad de la corteza, el viento, etc.). Aquellas arañas cuyos sistemas nerviosos eran capaces de calibrar mejor esa relación «velocidad de caminata vs. freno de seda» mediante feedback físico inmediato, lograban puentes de seda estables para cazar.
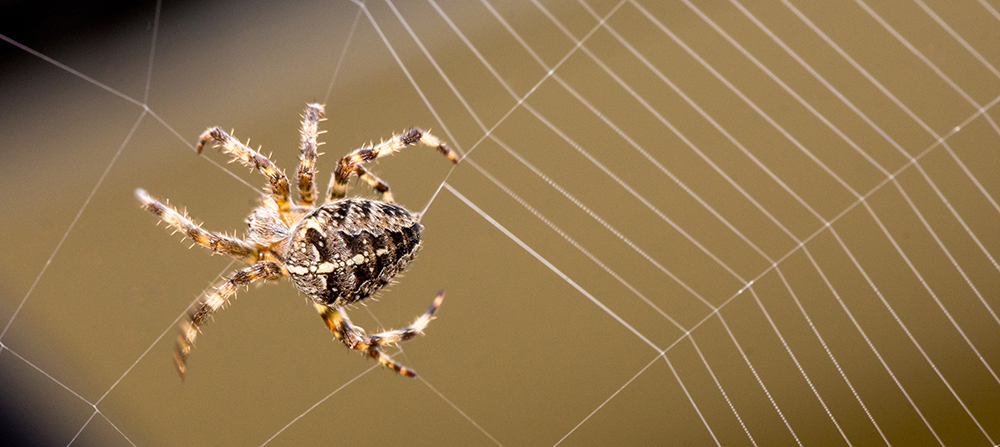
Foto. Araña tejiendo su telaraña
Y aquí es donde el efecto Baldwin hace su magia sin necesidad de que la araña sea consciente: En las primeras fases, las arañas con un sistema nervioso ligeramente más plástico, y por tanto adaptativo al entorno, comían más.
Con las generaciones, se produce una asimilación genética: Depender de la plasticidad consume tiempo, energía y neuronas. Si una mutación aleatoria nacía con el circuito ya «pre-configurado» para la tensión exacta que funcionaba el 90% de las veces en los árboles, esa araña ya no necesitaba «ensayar» ni ajustar mediante feedback. Directamente ejecutaba el movimiento perfecto de forma ciega. El comportamiento se automatizó y se convirtió en el Patrón de Acción Fija rígido que vemos hoy cuando las arañas construyen una tela.
En el comportamiento social especializado de un hormiguero, la evolución del comportamiento por efecto Baldwin pudo actuar de la siguiente manera:
La biología evolutiva cree que, en los inicios de la vida social, las hormigas viejas acababan en la periferia y en el exterior debido a un principio llamado desplazamiento por competencia y dominancia sensorial. Esta conclusión se ha obtenido mediante simulación matemática con modelos de autómatas. Los resultados de estos modelos se contrastaron luego analizando el comportamiento en el laboratorio de especies de hormigas actuales que conservan rasgos evolutivos muy antiguos o «primitivos» (como las del género Amblyopone o Harpegnathos).
Así es como ocurriría ese mecanismo mecánico y conductual en las fases iniciales:
1. El nido primitivo: El centro es para las más aptas
En los insectos sociales primitivos (como ocurre hoy en algunas avispas y abejas semi-sociales), el centro del nido —donde están la reina y las larvas— es la zona con mayor concentración de recursos y feromonas reales.
La pérdida de vigor físico: A medida que una hormiga primitiva envejecía, sus niveles de energía caían, sus mandíbulas se desgastaban y sus receptores antenales se deterioraban o se saturaban.
El desplazamiento físico: Las hormigas jóvenes, con sistemas sensoriales perfectos y más fuerza, competían mejor por estar en el centro cuidando a las larvas (que es la tarea metabólicamente más activa). Las jóvenes, literalmente, empujaban y desplazaban a las más viejas hacia las zonas menos congestionadas del nido: la periferia y los túneles de salida.
2. La «trampa» del hambre y los estímulos externos
Una vez que las hormigas viejas eran relegadas a la entrada del nido debido a esa competencia interna, su comportamiento cambiaba por pura flexibilidad adaptativa frente al hambre:
El flujo de alimento: En un hormiguero primitivo, las hormigas compartían la comida boca a boca (trofalaxia). Las jóvenes que estaban en el centro se quedaban con la mayor parte para alimentar a las larvas. A la periferia (la salida) llegaba muy poca comida.
El detonante del hambre: Las hormigas viejas acumuladas en la salida sufrían de desnutrición crónica. El hambre altera el sistema nervioso de cualquier insecto, aumentando drásticamente su actividad motora (empiezan a caminar de forma errática buscando alimento) y reduciendo su umbral del miedo.
El paso al exterior: Al estar hambrientas y caminar cerca de la superficie, el estímulo del olor de una fruta caída o un insecto muerto en el exterior se volvía irresistible. Cruzar la entrada del nido no era una decisión valiente ni un instinto de exploración; era la respuesta flexible de un individuo hambriento que maximizaba sus opciones de energía donde ya no había competencia de las jóvenes.
El Efecto Baldwin comienza a emerger
En este punto es donde el efecto Baldwin encuentra donde actuar:
La ventaja del grupo: Las colonias donde los individuos viejos sufrían este desplazamiento físico y terminaban saliendo a por comida (por hambre y exclusión) prosperaban más, porque no gastaban los recursos del centro del nido y traían nutrientes nuevos. El aprendizaje y la flexibilidad individual (aprender a buscar comida fuera para no morir de hambre) mantuvieron vivas a las colonias exitosas.
La asimilación genética: La selección natural favoreció cualquier mutación aleatoria que facilitara este proceso sin necesidad de pasar por el estrés del hambre o el rechazo físico. La evolución aprovechó que el propio envejecimiento del insecto degradaba ciertas vías neuronales y elevaba los niveles hormonales, y «conectó» ese declive biológico con un cambio de comportamiento innato y pacífico.
El comportamiento que empezó siendo el resultado de la exclusión social y la necesidad física terminó convirtiéndose, gracias al efecto Baldwin, en un sistema perfectamente programado y cooperativo de relevo laboral. Este sistema tiene además la ventaja adaptativa de que protege (dentro del nido) a las hormigas más valiosas (las jóvenes en edad reproductora) y sobreexpone en comportamientos útiles pero arriesgados a las ya “amortizadas” (las viejas a las que les queda poco tiempo de vida).
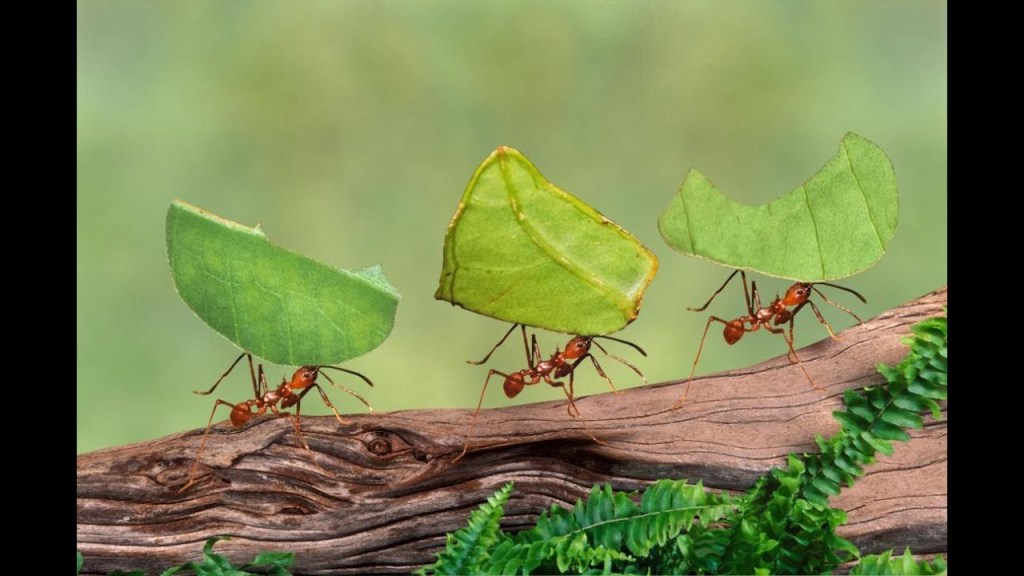
Foto. Hormigas recolectoras transportando trozos de hoja al nido
Un experimento científicamente controlado ha arrojado mucha luz sobre esta especialización fascinante:
Cuando los científicos retiran artificialmente a todas las hormigas jóvenes (las niñeras) de una colonia, ocurre algo asombroso que demuestra la increíble plasticidad de la evolución: las hormigas viejas (recolectoras) detienen su envejecimiento conductual, revierten su reloj biológico y vuelven a cuidar a las larvas de forma eficaz. [1]
Este fenómeno se conoce en biología como reversión conductual. El experimento demuestra que el reloj de envejecimiento de las hormigas no es un billete de ida inflexible, sino un sistema dinámico regulado por las necesidades de la colonia. [1]
Los cambios biológicos y químicos que ocurren en el cuerpo y cerebro de estas hormigas «ancianas» al verse obligadas a rejuvenecer se dividen en los siguientes procesos:
1. El desplome de la Hormona Juvenil y el reinicio neuropeptídico
Al no haber hormigas jóvenes, las larvas hambrientas empiezan a emitir feromonas de auxilio de forma masiva. Cuando las hormigas viejas entran en contacto con estas señales químicas, sus cuerpos reaccionan inmediatamente:
Freno hormonal: Los niveles de Hormona Juvenil (HJ), que estaban en su punto máximo impulsándolas a salir al sol, se desploman drásticamente a niveles propios de una hormiga recién nacida.
El circuito del hambre secuestrado: Investigaciones neurobiológicas recientes han descubierto que el cuidado de las larvas está íntimamente ligado a los circuitos cerebrales ancestrales del hambre. Dos moléculas clave regulan este interruptor: el Neuropeptido F (NPF) (que activa el instinto de alimentar) y la Alatostatina A (AstA) (que activa el instinto de salir a buscar comida). Al detectar unos niveles tan altos de feromonas de auxilio, el cerebro de la hormiga anciana dispara los niveles de NPF y suprime la AstA, obligándola químicamente a actuar como una niñera protectora. [2, 3]
2. Regeneración del tejido cerebral
El cambio no es solo psicológico o de actitud; su anatomía cambia. En especies como la hormiga saltadora (Harpegnathos saltator), los científicos han observado que cuando una recolectora vieja vuelve a convertirse en niñera, su cerebro recupera volumen. Las conexiones neuronales de los cuerpos fungiformes (las zonas del cerebro encargadas del aprendizaje y el olfato) se reconfiguran para volver a procesar los sutiles y oscuros olores del interior del nido en lugar de las referencias espaciales y visuales del exterior.
3. Modificación del reloj circadiano
Las hormigas recolectoras tienen un ritmo circadiano muy marcado de 24 horas (duermen de noche y buscan comida de día). Las niñeras, en cambio, tienen una actividad multitarea que oscila en ciclos mucho más cortos (por ejemplo, cada 8 horas) porque las larvas necesitan atención constante sin importar si es de día o de noche. Al revertir su rol, los genes del reloj biológico de las hormigas viejas cambian su ritmo de oscilación para adaptarse a la jornada de 24 horas sin descanso que requiere la guardería. [4]
¿Cómo encaja el Efecto Baldwin en este «Plan de Emergencia»?
Este experimento es, de hecho, la prueba definitiva de cómo opera la plasticidad fenotípica que da origen al efecto Baldwin:
La flexibilidad salvavidas (El motor): En la naturaleza, si una inundación o un depredador elimina a las forrajeras o a las niñeras, la colonia morirá si los individuos son rígidos. La capacidad de una hormiga vieja de responder al entorno modificando su conducta (plasticidad) es lo que salva a la colonia.
La presión evolutiva: Las colonias cuyos individuos ancianos tenían la flexibilidad neural de «entender» la química de las larvas y cambiar de rol sobrevivían a las catástrofes.
La asimilación genética: Lo que comenzó en las hormigas primitivas como una respuesta de estrés celular o una reacción puramente física al hambre de las larvas, terminó siendo asimilado genéticamente a través del efecto Baldwin. La evolución diseñó un intrincado sistema de compuertas químicas (como el eje NPF/AstA) para que esta reversión sea un mecanismo automático perfectamente engrasado dentro del ADN de la colonia. [3]
Gracias a esto, una hormiga vieja no necesita «aprender» o recordar cómo cuidar a una larva: el propio entorno presiona el botón químico de emergencia y su cuerpo retrocede en el tiempo biológico de forma automática. En las abejas ocurre un proceso de reversión biológica muy similar.
Este fenómeno de «rejuvenecimiento» inducido por el entorno ha abierto grandes vías de investigación sobre el envejecimiento celular, porque las hormiga que revierten su rol pueden llegar a vivir más tiempo (!).
[1] https://www.sciencedirect.com
[2] https://www.earth.com
[3] https://scitechdaily.com
[4] https://pubmed.ncbi.nlm.nih.gov
¿Qué ocurre con las hormigas limpiadoras (las de mediana edad) en esta misma situación en que se retira repentinamente a todas las hormigas jóvenes (niñeras)?
Debido a que su edad y sus niveles hormonales están justo en el medio, su respuesta ante la crisis es dual y asimétrica, dividiéndose en dos estrategias automáticas:
Las hormigas limpiadoras están en una fase de transición. Sus cerebros aún conservan parte de la maquinaria de procesamiento olfativo necesaria para identificar a las larvas. [2, 3] Al inundarse el hormiguero con feromonas de estrés de las larvas hambrientas, las limpiadoras que están físicamente más cerca de las cámaras de cría sufren un impacto químico inmediato. Sus niveles de Hormona Juvenil se frenan en seco y asumen el rol de niñeras de emergencia. Al estar ya dentro del nido, reaccionan mucho más rápido que las forrajeras viejas que están fuera, salvando la primera oleada de hambre de la cría. [3]
Pero aquí ocurre el verdadero problema logístico: si las hormigas viejas dejan de buscar comida en el exterior para bajar al nido a cuidar larvas, y las limpiadoras se ponen a hacer de niñeras… ¿quién alimenta a la colonia? [4]
Las hormigas limpiadoras que se encontraban cerca de los túneles de salida no reciben tanta feromona de las larvas. En su lugar, detectan que el flujo de comida boca a boca (trofalaxia) ha caído a cero porque las recolectoras han bajado a la guardería. El hambre dispara un pico artificial de Hormona Juvenil en estas limpiadoras. En cuestión de horas, este grupo se salta el resto de su etapa de limpieza y se convierte en forrajeras precoces. Salen al exterior antes de tiempo, asumiendo el riesgo de morir para mantener el suministro de nutrientes. [5]
Las tareas de limpieza se reducen al mínimo. En una crisis de vida o muerte biológica, la prioridad absoluta parecen ser los genes futuros (las larvas). Así, la organización del hormiguero decide abandonar temporalmente las tareas de mantenimiento no críticas. La excavación de nuevos túneles y el ordenamiento de la tierra se detienen por completo. La única limpieza que se mantiene es la profiláctica (antiviral/fúngica): Las pocas hormigas que se quedan realizando tareas de higiene se concentran exclusivamente en lamer a sus compañeras y rociar ácido fórmico para evitar que los hongos infecten el nido ahora que las defensas están desorganizadas. [6]
El efecto Baldwin y el modelo de «Umbrales de Respuesta» [7]:
La evolución no codificó una orden que diga «si faltan niñeras, el 50% limpia y el 50% cuida». Lo que la selección natural fijó en los genes (asimilación genética) fueron umbrales de respuesta individuales sutilmente diferentes. [1]
En las fases primitivas de la evolución, cada hormiga individual respondía al estrés de la suciedad o al llanto de las larvas según lo plástica que fuera su mente. Con el tiempo, el efecto Baldwin seleccionó un sistema donde cada hormiga nace con un «gatillo» químico ajustado a una intensidad ligeramente distinta: las limpiadoras con umbrales más bajos para el olor de las larvas se convirtieron en niñeras, y las que tenían umbrales más bajos para el hambre saltaron al exterior. La colonia se autoorganiza matemáticamente usando la propia diversidad genética de sus individuos. [1]
[1] https://pmc.ncbi.nlm.nih.gov
[2] https://phys.org
[3] https://pmc.ncbi.nlm.nih.gov
[4] https://pubmed.ncbi.nlm.nih.gov
[5] https://www.sciencedaily.com
[6] https://blog.willyvanstrien.nl
[7] https://www.nytimes.com


Deja una respuesta